Bienvenidos

Hola a todos y bienvenidos a QuieroSerMédico, un espacio dedicado a las ciencias sanitarias. Voy a ir directo al grano contando nuestro...

Mostrando entradas con la etiqueta Histología. Mostrar todas las entradas

Núcleo celular 2: Renovación celular

Las células somáticas pueden clasificarse según su actividad mitótica, evaluada a partir del número de metafases, mediante estudios autorradiográficos o con un gran aumento en el microscopio óptico.


Con el uso de dichos métodos las poblaciones celulares pueden clasificarse en:


  • Estáticas: compuestas por células que ya no se dividen, como por ejemplo las del músculo esquelético y cardíaco. En circunstancias específicas algunas pueden entrar en división mitótica, por ejemplo las del músculo cardíaco.
  • Estables: compuestas por células que se dividen episódica y lentamente, para mantener una estructura normal de tejidos y órganos, como por ejemplo las células endoteliales, los fibroblastos, células musculares lisas…
  • Renovables: compuestas por células que sufren división mitótica regularmente, aunque ésta puede realizarse lenta (células musculares lisas de los órganos huecos, células epiteliales del cristalino…) o rápidamente (células sanguíneas, fibroblastos de la dermis...)

Núcleo celular 1: Generalidades y componentes

1. Generalidades

Es un compartimento delimitado por membrana que contiene la información genética y el material necesario para la transcripción y traducción, en células eucariotas. La evaluación de su tamaño, forma y estructura desempeña un papel importante en el diagnóstico de tumores.

2. Componentes

-Envoltura nuclear:
Separa el nucleoplasma del citoplasma y proporciona una barrera permeable selectiva entre los mismos. Está formada por dos membranas nucleares, una interna y otra externa, con un espacio entre ellas, denominado cisterna perinuclear, que es contiguo con el espacio de la cisterna del RER. Además, ambas membranas contienen perforaciones denominadas poros. La membrana nuclear externa se parece a la del RER y se suelen observar ribosomas unidos a ella. La membrana nuclear interna está sostenida  por una malla de filamentos intermedios y proteínas asociadas, denominada lámina nuclear fibrosa. En cuanto a los poros, están formados por 8 unidades proteicas (nucleoporinas) que conforman una estructura cilíndrica, denominada complejo de poro nuclear.  Esas proteínas forman el armazón central entre el anillo citoplasmático y el nuclear. Desde el anillo citoplasmático sobresalen hacia el citoplasma 8 fibrillas proteicas. La función del poro nuclear es regular el paso de iones y proteínas entre el citoplasma y el núcleo, que va  a ser regulado según del tamaño de las mismas (si son moléculas pequeñas e hidrosolubles por difusión pasiva, si son macromoléculas necesitan de un mecanismo específico que depende de la energía del GTP).

-Nucleoplasma:
Es el material encerrado por la envoltura nuclear, con excepción de la cromatina y el nucléolo (filamentos proteicos, maquinaria de transcripción y traducción…).
-Cromatina:
Es un complejo muy plegado formado por ADN y proteínas estructurales (histonas y no histonas), que por un plegamiento adicional, en la mitosis, va a conformar los cromosomas. En el núcleo se encuentran dos formas de cromatina: una forma condensada, que recibe el nombre de heterocromatina (inactiva: no se transcribe ni se traduce), y una forma más dispersa, denominada eucromatina (activa: se transcribe y se traduce). A su vez, se distinguen dos tipos de heterocromatina:  la heterocromatina constitutiva, formada por secuencias repetitivas de ADN, que se encuentra en los telómeros (área ubicada en cada extremo del cromosoma) y en zonas cercanas al centrómero (punto de unión de las cromátidas), y la heterocromatina facultativa, que no tiene secuencias repetitivas y se encuentra en distintas zonas según el tipo de célula. Sin embargo, en algunas células, la heterocromatina facultativa, puede sufrir transcripción activa, como respuesta a condiciones específicas.
La heterocromatina predomina en las células metabólicamente inactivas (linfocitos circulantes, células plasmáticas, espermatozoides) y se distribuye en tres regiones: marginal (periferia del núcleo), en forma de cariosomas (cuerpos irregulares de cromatina por todo el núcleo) y asociada con el nucléolo. La eucromatina, se encuentra en el nucleoplasma y predomina en las células metabólicamente activas (neuronas, hepatocitos).
Las unidades más pequeñas que la conforman se denominan nucleosomas (enrollamiento de una molécula de ADN alrededor de una proteína formada por 8 histonas).

-Nucleolo:
Es una región no membranosa en la que se produce el ARN ribosómico (ARNr). Está bien desarrollado en las células activas en la síntesis de proteínas y presenta 3 regiones:

  • Los centros fibrilares, que contienen ADN con genes de ARNr, ARN polimerasa I y factores de transcripción. 
  • El material fibrilar, que contiene genes ribosómicos y ARNr.
  • El material granular, que contiene partículas prerribosómicas y representa el sitio de armado ribosómico. 
La red formada por el material granular y fibrilar se denomina nucleolonema.

Citoplasma celular 4: Inclusiones y matriz citoplasmática

Inclusiones
Son estructuras citoplasmáticas inertes que se forman por productos  metabólicos de las células. Consisten principalmente en gránulos de pigmento (la lipofuscina es el pigmento de senectud celular más común), gotitas de lípidos y glucógeno. Los gránulos de pigmento se encuentran rodeados por una membrana plasmática, mientras que las gotitas de lípidos y glucógeno se encuentran en la matriz nuclear o citoplasmática.

Matriz citoplasmática
La matriz citoplasmática (citosol) es un gel acuoso concentrado, compuesto por moléculas de diferentes tamaños y formas (electrolitos, metabolitos, proteínas, ARN, etc). Es el sitio de los procesos fisiológicos fundamentales para la vida de la célula.


Citoplasma celular 3: Orgánulos no membranosos

-Microtúbulos: 
Son tubos huecos y rígidos de proteínas (dímeros de tubulina α y β) que, en general, se encuentran en el citoplasma y son sintetizados, a partir de anillos de tubulina, en presencia de GTP y Mg2+, por el centro organizador de microtúbulos (MTOC), ubicado cerca del núcleo. Se extienden desde este centro hacia la periferia de la célula. El extremo que pertenece a la tubulina α se denomina sin crecimiento (-) y el que pertenece a la β se denomina con crecimiento (+), debido a que es el que se extiende hacia la periferia celular. Además, están presentes en los cilios y los flagelos.
Intervienen en varias funciones, tales como:
  • En el transporte vesicular, proporcionando un sistema de conexión similar a las vías del ferrocarril, a través del cual ocurre el desplazamiento.
  • Movimiento de cilios y flajelos.
  • Unión de los cromosomas con el uso mitótico y movimiento de los mismos durante la mitosis y meiosis.
  • Mantenimiento de la forma celular.
  • Elongación y desplazamiento celular y de orgánulos (unidos a proteínas). 

-Filamentos:
  • De actina: de forma similar a lo que ocurre con la tubulina, las moléculas de actina (actina G o actina libre en el citoplasma) se polimerizan en una estructura lineal helicoidal para formar filamentos, sin embargo son más finos, cortos y flexibles que los microtúbulos.  El extremo de crecimiento rápido se denomina (+) y necesita la presencia de ATP, K+ y Mg2+, y el extremo de crecimiento lento se denomina (-). El control y la regulación de la polimerización depende de la concentración local de actina G y de la interacción de las proteínas de unión a la actina (ABP). Los filamentos de actina están presentes en casi todos los tipos celulares y participan en:
    • Anclaje y movimiento de proteínas de la membrana.
    • Mantenimiento estructural de la superficie apical de las microvellosidades de las células absortibas. 
    • Locomoción celular.
    • Emisión de evaginaciones celulares. 
  • Intermedios: Se denominan así porque su diámetro es intermedio entre el de los microtúbulos y el de los filamentos de actina. Tienen función estructural. Las proteínas de estos filamentos se disponen en forma de dominio bastoniforme (en forma de varilla) central con dominios globulares a los extremos. Se forman a partir de un par de monómeros helicoidales que se enroscan entre sí formando dímeros superenrollados, y estos a su vez se enroscan entre sí, de modo antiparalelo, para generar un tetrámero escalonado. Se organizan en seis clases, dependiendo de su estructura génica, composición proteica y su distribución celular: 
    • Clases 1 y 2: Reciben el nombre de queratinas y representan la mayor parte de los filamentos intermedios. Las queratinas se arman en forma de heteropolímeros: molécula de queratina ácida (clase 1) + molécula de queratina básica (clase 2), formando así un heterodímero. Los filamentos de queratina se encuentran en diferentes células de origen epitelial. Mediante los desmosomas se unen con los filamentos de queratina de las células vecinas.
    • Clase 3: Este grupo contiene cuatro proteínas: la vimentina, proteína de filamento intermedio de distribución más amplia (en todos los tejidos derivados del mesodermo), y otras similares a esta, tales como la desmina (en las células musculares), la ácida fibrilar glial (en las células gliales y mayoritariamente en los astrocitos) y la periferina (en neuronas periféricas). Estas proteínas, excepto la desmina, forman homopolímeros, a diferencia de las queratinas.
    • Clase 4: Este grupo recibe el nombre de neurofilamentos. Se extienden desde el cuerpo neuronal hasta el final del axón y dendritas, proporcionándole sostén.
    • Clase 5: Se denominan láminas, forman una estructura reticular asociada a la envoltura nuclear y están presentes en el nucleoplasma de casi todas las células diferenciadas del organismo.
    • Clase 6: Se denominan filamentos perlados y se encuentran en el cristalino del ojo. Están formados por faquinina y filensina. 
Las proteínas asociadas a los filamentos intermedios son ensenciales para la integridad de las uniones célula-célula y célula-matriz extracelular, ya que proporcionan rigidez y resistencia mecánica contra las fuerzas extracelulares.

-Centríolos:
Son cilindros citoplasmáticos cortos, en pares, con forma de vara, formados por nueve tripletes de microtúbulos. Suelen encontrarse cerca del núcleo, parcialmente rodeados por el aparato de Golgi y asociados a una zona de material pericentriolar denso. Dicha región se denomina centro organizador de microtúbulos (MTOC) y es la zona donde se forma la mayor parte de los microtúbulos y desde la que se dirigen hacia otros lugares de la célula, como ya se ha mencionado. El desarrollo del MTOC depende de la presencia de centríolos, por lo que si no hay desaparecerán y la formación de microtúbulos se verá afectada. Los centríolos proporcionan cuerpos basales necesarios para la formación de cilios y flagelos y alinean el huso mitótico durante la división celular. 

-Ribosomas: 
Son partículas compactas formadas por ribonucleoproteínas (ácidos nucléicos+proteínas). Pueden encontrarse adosados al RER, como ya se ha dicho anteriormente, o bien libres en el citosol. Están constituidos por dos subunidades que difieren en tamaño y forma: en las células procariotas su coeficiente de sedimentación es de 70S, mientras que en las eucariotas de 80S. En ellos se lleva a cabo la síntesis de las proteínas (traducción).
Existen estructuras denominadas polisomas, que se generan cuando varios ribosomas se adosan a la vez a una molécula de ARNm para “leerla”.


-Proteosomas:
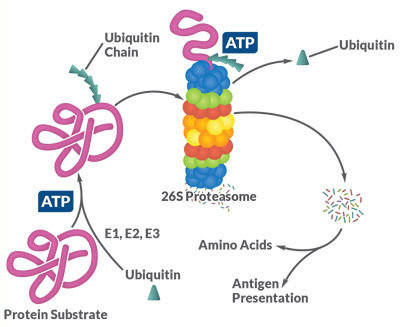
Es un complejo cilíndrico formado por cuatro anillos proteicos apilados, con un poro central. Su función es la degradación de proteínas anormales (dañadas), normales (que necesitan inactivarse) y de epítopos (lugar de unión anticuerpo-antígeno). Para que las proteínas puedan degradarse es necesario que posean marcadores denominados ubiquitinas, lo que se lleva a cabo mediante las enzimas E1,E2 y E3: activadora, conjugadora y ligasa de ubiquitina, respectivamente.
Se componen de dos subunidades α externas, que funcionan como puerta del proteosoma reconociendo los complejos poliubiquitínicos de las proteínas para permitir el paso a su degradación, y de dos subunidades β internas con actividad proteolítica.

Citoplasma celular 2: Orgánulos membranosos

-La membrana plasmática o celular: Es una bicapa lipídica compuesta principalmente por lípidos anfipáticos (fosfolípidos), colesterol y proteínas integrales y periféricas, adheridas a la superficie de los mismos. Las cadenas de ácidos grasos de las moléculas lipídicas se enfrentan entre sí, tornando hidrófoba la porción interna de la membrana, mientras que la superficie de la membrana está formada por los grupos polares de las dichas moléculas, tornándola hidrófila. La organización conjunta de todos los elementos de la membrana se denomina modelo de mosaico fluido modificado.

Todas estas moléculas contribuyen a establecer microambientes extracelulares en la superficie de membrana que cumplen funciones específicas en el metabolismo, en el reconocimiento celular, en la asociación celular, en el transporte de sustancias, y sirven como sitios receptores para hormonas.
Esta membrana delimita la célula y también numerosos orgánulos dentro de la célula.

-Vesículas de transporte: el transporte vesicular contribuye a  la integridad de la membrana plasmática  y a la transferencia de moléculas entre los diferentes compartimentos celulares. Los tres mecanismos de transporte vesicular que involucran a la membrana son la endocitosis, exocitosis y pinocitosis. 

-Aparato de Golgi: orgánulo formado por sacos aplanados apilados y extensiones tubulares, que forma retículos alrededor del núcleo celular. Presenta vesículas asociadas a las cisternas aplanadas. Como ya se ha dicho anteriormente, participa en la modificación postraduccional y en la clasificación y envasado de las proteínas. Las cisternas situadas más cerca del RER constituyen la cara formadora o cara cis, mientras las cisternas ubicadas más lejos constituyen la cara madurativa o cara trans (clasificación y envasado de proteínas). Está bien desarrollado en las células secretoras. 

 -El retículo endoplasmático rugoso (RER): Junto con los ribosomas, constituye el sistema de síntesis proteica de la célula. Con el microscopio electrónico de transmisión se observa como una serie de sacos aplanados e interconectados, denominados cisternas. Estas cisternas presentan ribosomas adheridos a su superficie exterior de la membrana, mediante proteínas de acoplamiento ribosómico. 

Las proteínas sintetizadas entran a la luz del RER, donde sufren modificaciones por acción de enzimas y después, la mayoría, son exportadas hacia el aparato de Golgi. Este orgánulo también sirve como punto de control de calidad de las proteínas: si las proteínas neosintetizadas no han sufrido correctamente la modificación postraduccional (fosforilación, glucosilación, acetilación, metilación, etc) se exportan de nuevo al citoplasma para que se degraden, mediante proteínas denominadas coatómeros, que formarán las vesículas transportadoras.

Aunque prácticamente todas las células corporales contienen este orgánulo, el RER está particularmente bien desarrollado en las células secretoras (glandulares, fibroblastos, plasmocitos, odontoblastos, ameloblastos y osteoblastos) y en las neuronas.

-Retículo endoplasmático liso (REL): orgánulo formado por una serie de túbulos cortos y anastomosados, similar al RER, pero no están asociados a ribosomas. Puede ser una extensión del RER o estar separado de él. Es abundante en las células que participan en el metabolismo lipídico (síntesis de ácidos grasos y fosfolípidos) y está bien desarrollado en las células que producen esteroides (corteza suprarrenal y de Leydig) y también en las células hepáticas (con función detoxificadora). En las células osteomusculares y cardíacas el REL adopta el nombre de retículo sarcoplásmico, que capturando el Ca+2 conduce los impulsos nerviosos al interior de la célula para su contracción. Además, participa en el metabolismo del glucógeno y en la formación y reciclaje de membranas.

-Endosomas: son compartimentos situados cerca de la membrana celular, donde se forman por fusión de las vesículas originadas de la misma. Se denominan endosomas tempranos y las vesículas que se originan en ellos viajan hasta estructuras más profundas del citoplasma, donde se transforman en endosomas tardíos, los cuales se transformaran a su vez en lisosomas. Los endosomas tempranos tienen una estructura tubulovesicular (su luz se subdivide en cisternas separadas por la invaginación de su membrana), mientras que los endosomas tardíos son más complejos y presentan membranas internas con aspecto de cebolla. La función de los endosomas tempranos es clasificar y reciclar proteínas interiorizadas por vías endocíticas.

-Lisosomas: Son orgánulos digestivos, ricos en enzimas hidrolíticas (proteasas, nucleasas, lipasas, glucosidasas…). Representan el compartimento digestivo principal de la célula, que degrada macromoléculas derivadas de procesos endocíticos y también de la propia célula (autofagia), como proteínas plasmáticas, orgánulos...Así pues, mantienen un equilibrio controlado entre las funciones celulares anabólicas y catabólicas y, además permiten que la célula elimine los orgánulos no deseados. Los lisosomas se forman mediante mecanismos complejos que tienen lugar en los endosomas, como ya se ha dicho. Sus enzimas se forman en el retículo endoplasmático rugoso y se transportan al aparato de Golgi para su clasificación. Presentan únicamente una membrana, que es capaz de resistir los procesos de digestión hidrolíticos que tienen lugar en su interior. Esta membrana está compuesta por proteínas estructurales y transportadoras, sacáridos, colesterol y un lípido denominado lisobifosfatídico.

-Mitocondria: son abundantes en las células que generan y gastan energía: células musculares estriadas, en células involucradas en el transporte de líquidos y electrolitos, en la pieza intermedia de los espermatozoides y contiguas a los pliegues de la membrana plásmática de las células del túbulo contorneado proximal en el riñón. Poseen el sistema de enzimas que genera ATP mediante el ciclo del ácido cítrico, fosforilación oxidativa y beta oxidación de los ácidos grasos. Se cree que este orgánulo evolucionó a partir de bacterias aeróbicas que vivían en simbiosis dentro de las células eucariotas. Están presentes en todas las células excepto en los eritrocitos y queratinocitos terminales. Además, perciben el estrés celular y “son capaces de decidir” si la célula vive o muere, mediante el inicio de la apoptosis.

-Peroxisomas: son orgánulos esféricos que poseen enzimas oxidativas, en particular la catalasa y otras peroxidasas. Se encuentran en la mayoría de los tipos celulares, pero son más abundantes en las células hepáticas y renales. Su cantidad se incrementa en respuesta a la dieta, fármacos y estimulación hormonal.

Citoplasma celular 1: Generalidades de la célula y el citoplasma

Las células son las unidades estructurales y funcionales básicas de todos los organismos pluricelulares. Las actividades diarias de los organismos (protección, ingestión, digestión, absorción de metabolitos, eliminación de residuos, movimiento, reproducción y la muerte) son reflejos de procesos similares que ocurren dentro de cada célula del cuerpo humano. Algunas células desarrollan una o más de estas funciones en un grado tal de especialización que son identificadas por su función, por ejemplo: todas las células contienen  proteínas de filamentos contráctiles, pero las células musculares contienen grandes cantidades de las mismas, lo que les permite realizar su función especializada.


Las células pueden dividirse en dos compartimentos principales: el citoplasma y el núcleo. El citoplasma es la región de la célula localizada fuera del núcleo. A su vez, contiene orgánulos ("órganos pequeños"), citoesqueleto (formado por proteínas polimerizadas que construyen microtúbulos),  e inclusiones (materiales como pigmentos, lípidos, glucógeno, sustancias de desecho…) suspendidas en un gel acuoso denominado matriz citoplasmática. Dicha matriz está formada por diferentes solutos, en los que se incluyen iones inorgánicos (Na+,K+,Ca2+…) y moléculas orgánicas (metabolitos intermedios, hidratos de carbono, lípidos, proteínas y ARN). El núcleo es el orgánulo más grande de la célula y contiene el genoma y las enzimas necesarias para la replicación y transcripción del ADN. Ambos compartimentos trabajan en conjunto para mantener la viabilidad celular.

Técnicas 2: Microscopía

El microscopio se emplea para ampliar una imagen a un nivel en el que la retina pueda resolver la información que, de otro modo, estaría por debajo de su límite de resolución.
El poder de resolución es la capacidad de una lente para obtener imágenes separadas de objetos que están muy juntos. Esta resolución depende, además del sistema óptico, de la longitud de onda de la luz, del espesor de la muestra, la calidad de la fijación y de la intensidad de la tinción.

1. Microscopía óptica

 Microscopio óptico: uso correcto del microscopio óptico


La iluminación Köler es una clave fundamental para la buena microscopía. Los pasos para del ajuste para conseguir una buena iluminación de Köler:
  • Se enfoca la muestra.
  • Se cierra el diafragma de campo.
  • Se enfoca el condensador hasta que el contorno de su diafragma de campo aparezca bien nítido en el foco.
  • Se centra el diafragma de campo y después se abre dicho diafragma hasta que la luz cubra todo el campo observado.
  • Se retira el ocular y se observa la pupila de salida del objeto. Se irá cerrando el diafragma del condensador hasta cubrir dos terceras partes de la abertura del objetivo. 

Otros sistemas ópticos

-Microscopio de contraste de fases: empleado para aumentar el contraste sin teñir, aprovechando la diferencia de refracción que existe entre las diferentes partes de una muestra.
-Microscopio de campo oscuro: está equipado con un condensador especial que ilumina la muestra con mucha intensidad y de forma oblicua. Así el campo de visión aparece como un fondo oscuro en el que las partículas pequeñas de la muestra que reflejan parte de la luz en el objetivo aparecen brillantes.
-Microscopio de fluorescencia: se emplea para visualizar moléculas con fluorescencia natural o autofluorescencia y con fluorescencia secundaria, al exponerlas a una fuente de luz ultravioleta. Ejemplos de dichas moléculas: vitamina A, algunos neurotransmisores y anticuerpos.
-Microscopio ultravioleta: la imagen generada en él va a depender de la luz ultravioleta que sea capaz de absorber las moléculas de la muestra. Esta microscopía se asemeja al funcionamiento de un espectrofotómetro, ya que los resultados se registran de forma fotográfica. La muestra no se puede observar directamente a través de una lente, ya que la luz UV no es visible y dañaría el ojo.  Es útil para estudiar ácidos nucleicos, proteínas que contienen determinados aminoácidos y para determinar cuantitativamente la cantidad de ADN Y ARN.
-Microscopio confocal de barrido: permite observar una muestra en tres dimensiones. Utiliza un sistema de iluminación láser, fuertemente convergente y movida por un sistema de espejos a través de la muestra, que produce una luz de alta intensidad. Un programa informático reconstruirá la imagen a partir de los datos registrados durante la exploración de la muestra.

3. Microscopía electrónica

Hay dos tipos principales de microscopios electrónicos:
-Microscopio electrónico de transmisión (MET): utiliza la interacción de un haz de electrones con la muestra para producir la imagen.
-Microscopio electrónico de barrido (MEB): utiliza un haz de electrones que barre la superficie de la muestra. Las imágenes creadas son tridimensionales y muestran la estructura superficial de la muestra.

4. Microscopía de fuerza atómica

En el microscopio de fuerza atómica una sonda puntiaguda muy fina explora la muestra a lo largo del eje x, repitiendo la exploración en varios intervalos a lo largo del eje y. Una gran ventaja de este sistema es que, a diferencia de los sistemas ópticos, permite la visualización de muestras que no estén en vacío. Por ejemplo  de células vivas y de su medio circundante.

5. Microscopía virtual

Es un procedimiento digital que se emplea como alternativa al examen de portaobjetos de vidrio con el microscopio óptico. Combina la microscopía óptica convencional con la tecnología digital. La muestra virtual obtenida es una representación digital del preparado, que se podrá observar sin la necesidad de un microscopio óptico. 

Técnicas 1: Técnicas empleadas en histología

1. Generalidades

La histología, también llamada anatomía microscópica, es el estudio de las estructuras microscópicas de los tejidos y órganos del cuerpo.
Para ello, en la actualidad, se emplean más comúnmente el microscopio óptico, el de fuerza atómica (MFA) y además la microscopía virtual (método que permite examinar la muestra en la pantalla de un ordenador o dispositivo móvil).

2. Preparación del tejido

Tinción con hematoxilina y eosina con fijación en formalina

Esta técnica es la que se utiliza con mayor frecuencia.

Primer paso: La fijación. Se realiza para conservar la estructura de la muestra, para poder llevar a cabo los tratamientos posteriores. La muestra debe sumergirse en el fijador nada mas extraerse. El fijador comúnmente usado es la formalina: solución acuosa de formaldehido al 37%, en combinación con otras sustancias químicas.
Sin embargo, la formalina, no reacciona con los lípidos, por lo que es un mal fijador de las membranas celulares. Así pues, para conservar las estructuras de la membrana se emplean fijadores especiales, con metales pesados que se unan a los fosfolípidos, tales como permanganato y osmio.

Segundo paso: después de dicha fijación, la muestra se prepara para su inclusión en parafina. Se lava y se deshidrata mediante disoluciones alcohólicas de concentración creciente, hasta llegar al 100%. A continuación la muestra se aclara, con solventes orgánicos, tales como el xileno o el tolueno, con el objetivo de extraerle el alcohol.
A continuación se realiza la inclusión de la muestra en parafina fundida. Se realiza con el fin de poder realizar posteriormente un corte muy delgado de la muestra (de 5 a 15 µm). Una vez que la parafina se ha secado y endurecido se formará un bloque, en cuyo interior se encuentra la muestra. Dicho bloque se colocará en una máquina cortadora, llamada micrótomo, que realizará los cortes ya mencionados. Estos cortes se colocan sobre un portaobjetos de vidrio, utilizando pineno o resinas de acrílico como adhesivo.

Tercer paso: tinción de la muestra, con el objetivo de permitir su posterior examen, puesto que los cortes de parafina son incoloros. Para ello, la parafina debe extraerse con xileno o tolueno y los tejidos han de rehidratarse, mediante soluciones de alcohol de concentración decreciente.  A continuación el tejido que ha quedado sobre el portaobjetos se tiñe con hematoxilina en agua. Después, la muestra se vuelve a deshidratar, mediante las soluciones de alcohol de concentraciones crecientes y se vuelve a teñir con eosina en alcohol.

Cuarto paso: la muestra se pasa por xileno o tolueno y se le coloca un medio de montaje no acuoso. A continuación se le coloca un cubreobjetos para obtener así el preparado final y permanente.
  • Demostración del efecto de la hematoxilina y la eosina actuando por separado y juntas:
Ambos colorantes juntos van a conseguir que la muestra se pueda examinar con mucha mayor precisión, ya que cada uno por separado tiñe los elementos de la muestra para los que presenta más afinidad.

Otras tinciones

A pesar de los buenos resultados obtenidos con la tinción de hematoxilina y eosina, algunos componentes, tales como la elastina, fibras reticulares, membranas basales y lípidos, no se pueden observar claramente. Por ello, cuando se desea examinar dichos componentes, es necesario emplear procedimientos de tinción selectivos. Dichos procedimientos incluyen el uso de orceína y fucsina-resorcina, para los materiales elásticos, y la impregnación argéntica para las fibras reticulares y membranas basales.